
Dans l’arbre généalogique des gastéropodes, il existe un instant de rupture biologique qui a radicalement changé le destin des océans. Pour le comprendre, il faut remonter à la fin de l’ère des dinosaures, au Crétacé. À cette époque, la très grande majorité des escargots marins partagent une anatomie alimentaire ancestrale : une langue rigide et rubanée, recouverte de milliers de minuscules dents microscopiques chitineuses, appelée la radula. Ce système, comparable à une râpe ou une bande de papier de verre, est idéal pour racler le film d’algues sur les rochers ou broyer des détritus sédimentaires – une stratégie passive que l’on retrouve encore aujourd’hui chez les Colloniidae ou les Phasianellidae.
I. Introduction
Une lignée de micro-gastéropodes a opéré une métamorphose révolutionnaire. Au lieu de perfectionner leur râpe pour brouter plus efficacement, ils ont radicalement détourné cette structure anatomique pour en faire une arme offensive. Au fil des millions d’années, la membrane radulaire s’est réduite, les milliers de dents superflues ont disparu, et les quelques dents latérales restantes se sont allongées, creusées et affûtées jusqu’à devenir de véritables aiguilles hypodermiques indépendantes.
Cette transition d’une alimentation végétarienne ou détritivore vers une prédation ultra-spécialisée a donné naissance à la super-famille des Conoidea (les anciens Toxoglosses, ou « langues toxiques »). L’innovation ne s’est pas arrêtée à la flèche : elle a nécessité la mise en place conjointe d’une usine chimique (le conduit à venin) et d’une pompe mécanique (le bulbe musculaire) capables de propulser des molécules paralysantes.
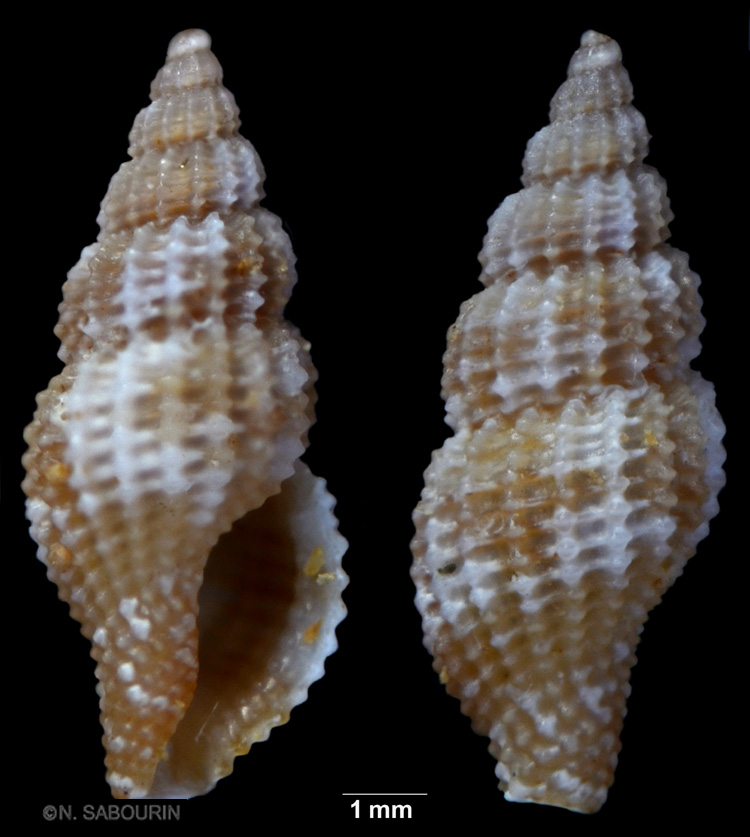
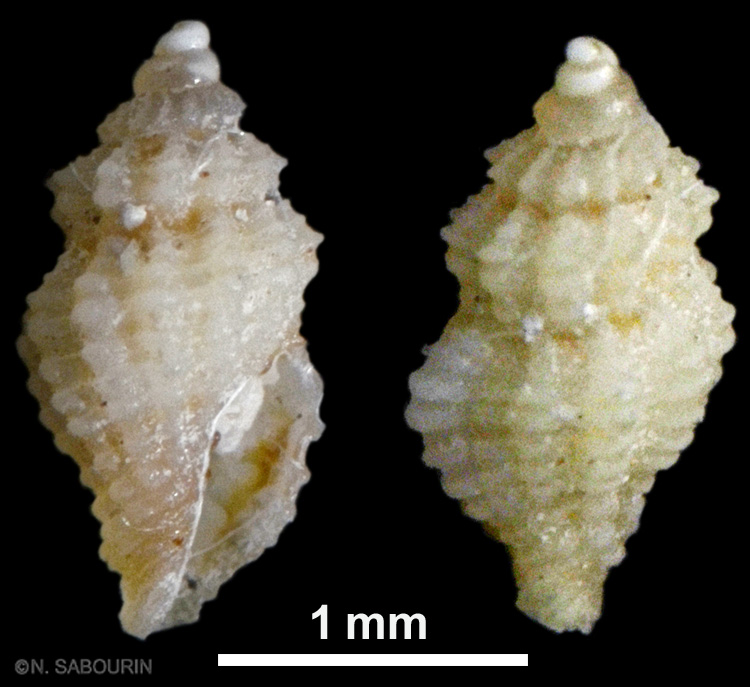
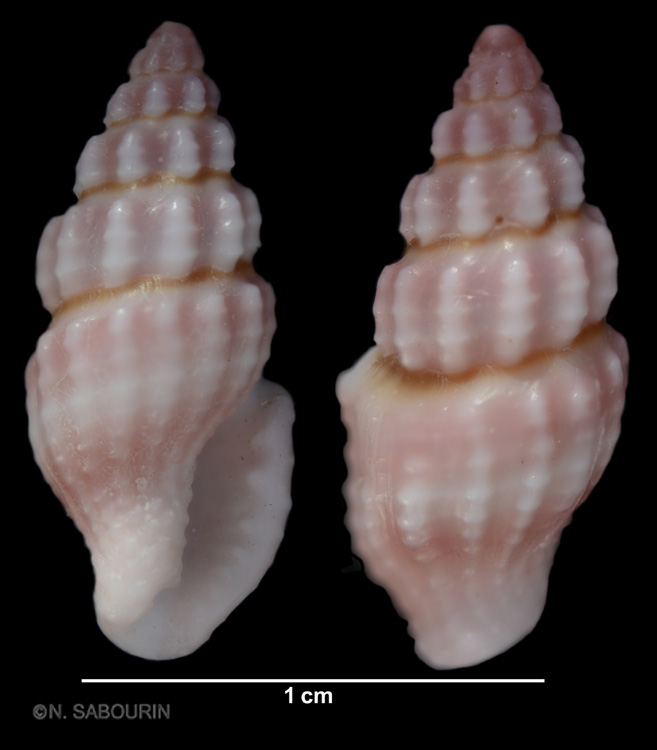
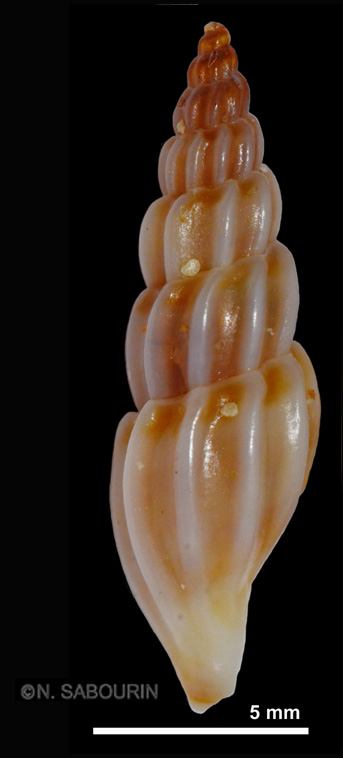
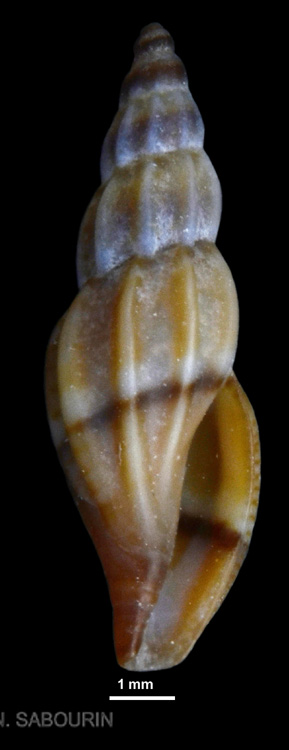
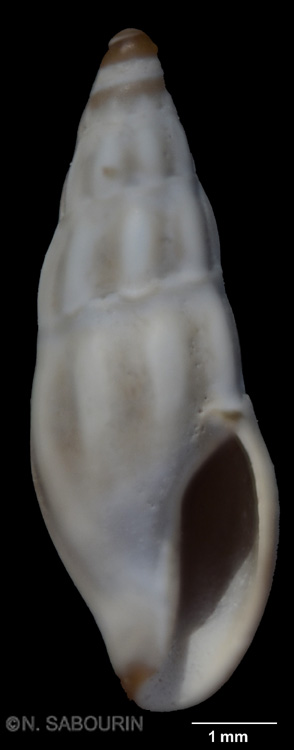
Ce grand saut évolutif a déclenché une radiation adaptative fulgurante. Libérés des contraintes du broutement, ces gastéropodes ont conquis toutes les niches écologiques des fonds marins, des récifs intertropicaux jusqu’aux sables meubles de nos côtes européennes. En observant une simple Mangelia ou une Raphitoma de quelques millimètres sous la loupe binoculaire, nous ne contemplons pas seulement une jolie coquille miniature : nous observons le sommet d’une course aux armements évolutive vieille de 70 millions d’années, où la plasticité d’une simple langue a ouvert la voie à l’une des plus redoutables pharmacies naturelles du monde vivant.
II. L’arbre des armes : Une convergence biochimique et anatomique
Pendant longtemps, une vision linéaire de l’évolution a laissé penser que l’appareil venimeux des Conoidea avait atteint son apogée chez les grands cônes tropicaux, et que les micro-gastéropodes des sédiments n’en possédaient qu’une version « primitive » ou sous-développée. Les analyses phylogénétiques modernes ont totalement balayé ce dogme. L’évolution de l’appareil venimeux n’est pas une ligne droite : c’est un arbre buissonnant où les structures se font et se défont au gré des pressions sélectives.
Le mythe du système unique
Loin d’être une simple copie miniature, l’appareil des familles comme les Mangeliidae, Raphitomidae ou Horaiclavidae résulte de trajectoires évolutives parallèles. Le moteur principal de cette diversification est une incroyable plasticité anatomique. L’appareil venimeux est modulaire, composé de trois pièces principales qui peuvent évoluer indépendamment les unes des autres :
- Le bulbe musculaire (la pompe) : Sa fonction est mécanique. En se contractant, il propulse le venin vers la proie. Chez les micro-espèces, ce bulbe a subi une pression évolutive unique liée à la miniaturisation. Pour compenser la perte de longueur des canaux due à la petite taille de l’animal, le bulbe est devenu proportionnellement gigantesque par rapport au reste de la région céphalique. Il s’agit d’une adaptation physique indispensable pour générer une pression de tir suffisante et instantanée.
- Le conduit sécréteur (l’usine) : C’est le lieu de synthèse des toxines. Chez les grands cônes, il est démesurément long et entortillé pour maximiser la surface de production. Chez nos micro-genres comme Mangelia ou Bela, l’évolution a favorisé un canal plus court mais d’une densité cellulaire extrême, optimisé pour produire des cocktails peptidiques hautement concentrés et immédiatement létaux pour de petits invertébrés.
- Le sac radulaire (le chargeur) : C’est la poche où sont stockées les flèches. Sa forme et sa capacité varient drastiquement selon le régime alimentaire. Il peut abriter des dizaines de harpons prêts à l’emploi ou seulement une poignée d’armes ultra-sélectionnées.
Le coût de la guerre chimique : Les pertes secondaires
Preuve ultime que l’appareil venimeux est un trait biologique dynamique et coûteux pour l’organisme : certaines lignées de Conoidea l’ont purement et simplement abandonné au cours de leur histoire évolutive.
La synthèse de venin et la fabrication de dents radulaires complexes demandent une énergie considérable. Chez plusieurs genres de la famille des Terebridae (les coquilles en vis), ou chez certaines branches de micro-gastéropodes, l’appareil venimeux a totalement régressé. Ces animaux sont redevenus des prédateurs « bruts », capturant des vers lents par simple succion ou à l’aide d’un proboscis adhésif. L’évolution n’est pas une marche forcée vers le perfectionnement continuel de l’armement ; elle valide simplement ce qui est énergétiquement rentable dans un environnement donné.
III. Mosaïque de structures : De la seringue hypodermique à la griffe
Lorsque l’on observe la diversité mécanique au microscope, on comprend que l’évolution a exploré des voies radicalement différentes pour délivrer le venin. La forme de la dent radulaire et son mode de fixation déterminent entièrement la stratégie de chasse de l’animal.
1. Le modèle « Seringue perfectionnée » (Mangelia et Raphitoma)
C’est le chef-d’œuvre de la miniaturisation. Chez des genres comme Mangelia ou Villiersiella, la membrane radulaire ancestrale a presque totalement disparu. Le sac radulaire ne sert plus qu’à stocker des flèches individuelles et amovibles.
Chaque dent est une aiguille hypodermique d’une finesse microscopique absolue. Elle est creuse, dotée d’une rainure ou cannelure longitudinale qui permet au venin de s’écouler par capillarité. Lors de la chasse, une dent migre du chargeur vers l’extrémité du proboscis extensible. Le mollusque applique sa trompe contre le ver polychète, enfonce la dent-harpon et injecte son cocktail neurotoxique. La dent est souvent à usage unique, perdue ou avalée avec la proie, obligeant le système à en fabriquer continuellement de nouvelles.
IV. Anatomie comparée : Intégrer le système dans une « petite tête »
L’appareil venimeux n’est pas une structure isolée : il est branché comme une dérivation sur le tube digestif principal.
Le conduit venimeux (qui apporte le venin depuis le canal sécréteur) et le sac radulaire (qui stocke les flèches) débouchent ensemble au même point, juste avant que l’œsophage ne se prolonge vers l’estomac. C’est dans ce carrefour qu’une micro-aiguille radulaire est saisie, chargée dans le proboscis extensible, et baignée de toxines sous la pression du bulbe musculaire géant avant d’être projetée vers l’extérieur.
V. Le moteur de l’évolution : La guerre des peptides
Si la mécanique des micro-harpons et des griffes radulaires impressionne, le véritable champ de bataille de l’évolution se situe au niveau moléculaire. Pour un gastéropode de quelques millimètres, la survie dépend entièrement de sa vitesse de frappe biochimique. C’est ici qu’intervient une fantastique course aux armements chimique : la diversification des peptides du venin (les mangelitoxines chez les Mangeliidae et les turritoxines chez les Turridae).
La plasticité génétique : Une usine à mutations Pourquoi ces micro-mollusques possèdent-ils des venins aussi complexes et changeants ? La réponse réside dans l’architecture de leur génome. Les gènes qui codent pour ces toxines peptidiques varient et se dupliquent à une vitesse exceptionnelle.
Lorsqu’un gène codant pour une toxine se duplique, l’une des copies conserve sa fonction protectrice vitale pour chasser, tandis que la seconde copie devient un véritable laboratoire d’expérimentation évolutive. Elle peut accumuler des mutations à une vitesse fulgurante sans mettre en péril la vie de l’animal. De plus, ces micro-gastéropodes pratiquent d’intenses modifications post-traductionnelles : après avoir synthétisé le peptide, leurs cellules réorganisent sa structure tridimensionnelle pour en décupler l’efficacité, maximisant ainsi leur arsenal chimique à partir d’un nombre réduit de gènes de départ.
La spécialisation dictée par le menu
Ce n’est pas la taille de la coquille ni sa couleur qui dictent la composition du venin, c’est la nature exacte de sa proie. Un micro-gastéropode chassant un type très spécifique de ver polychète fouisseur doit faire face au système nerveux très précis de ce ver. Si le ver développe au fil des générations une mutation pour résister au venin, le mollusque s’éteint… à moins que son usine à gènes n’ait déjà produit une variante peptidique capable de contourner cette résistance.
Cette pression de sélection permanente a forcé les mangelitoxines à devenir des clés moléculaires d’une précision chirurgicale. Elles ciblent des sous-types extrêmement spécifiques de canaux ioniques voltage-dépendants (en particulier les canaux à sodium et à potassium situés sur les membranes des neurones des proies. En bloquant instantanément l’influx nerveux par occlusion des pores cellulaires, le venin provoque une paralysie flasque ou tétanique immédiate.
C’est précisément cette hyper-sélectivité chirurgicale — fruit de millions d’années de face-à-face dans le sable — qui intéresse la recherche médicale moderne pour concevoir les antalgiques hautement ciblés et non addictifs de demain.
VI. Conclusion : La bibliothèque moléculaire du sédiment
Le générique de fin de cette course aux armements évolutive s’écrit aujourd’hui dans les laboratoires de pointe. Grâce aux révolutions technologiques récentes — notamment la transcriptomique, qui permet de séquencer et de cartographier l’intégralité des gènes actifs d’une glande venimeuse à partir d’un échantillon microscopique —, les chercheurs n’ont plus besoin de récolter des milliers de spécimens pour percer leurs secrets. Une seule petite Mangelia ou une unique Haedropleura isolée dans vos sédiments de référence suffit désormais à ouvrir les pages d’un nouveau chapitre de la biochimie.
Comprendre comment l’évolution a façonné ces micro-appareils et diversifié ces familles de peptides est bien plus qu’une simple curiosité académique. C’est la boussole qui guide la conception des médicaments de demain. En décryptant la géométrie de ces clés moléculaires affûtées depuis le Crétacé, la médecine moderne apprend à concevoir des antalgiques ultra-ciblés ou à développer des molécules neuroprotectrices innovantes.
Mais ce film d’action dépend d’un équilibre écologique fragile. Si l’on s’inquiète légitimement de la disparition des grands récifs coralliens, les micro-habitats sédimentaires de nos propres côtes européennes subissent eux aussi de plein fouet les pressions anthropiques et les modifications environnementales. Les effondrements localisés de certaines populations de micro-Conoidea rappellent que la perte de biodiversité frappe aussi l’infiniment petit.
Sauvegarder ces quelques millimètres de nacre et de vie cachés sous le sédiment, ce n’est pas seulement préserver le patrimoine naturel de nos rivages ; c’est protéger une immense bibliothèque moléculaire encore largement inexplorée. La prochaine grande avancée médicale dort peut-être au fond d’une éprouvette de sédiments, au creux d’une coquille miniature qui a passé 70 millions d’années à perfectionner son art.

Votre commentaire